

品种概览
中文名: 粉蕉
英文名: Pisang Awak
其他写法: Fenjiao
主要基因组型: ABB,三倍体;较新的栽培品种群目录同时收录 ABBB 四倍体材料
传统分类: Pisang Awak 亚组
较新分类口径: Pisang Awak 栽培品种群(cultivar group)
类型: 多用途栽培蕉,以无性繁殖延续
主要用途: 鲜食、未熟果烹调、加工、榨汁和酿造
代表性名称与材料: Namwa / Kluai Namwa(泰国)、Kayinja(东非)、Karpuravalli(印度),以及中国的广粉1号、矮粉1号、中粉1号、粉杂1号等
典型特征: 生长势较强,栽培品种群内部株高和果实形态变化较大;中国部分鲜食粉蕉果指相对短粗,果肉常为乳白或奶油色
主要限制: 多份材料对香蕉枯萎病 Foc R1 表现感病,TR4 也可侵染;中国粉蕉产区还受到细菌性软腐病、鞘腐病等病害影响
当前状态: 全球广泛栽培的重要 ABB / ABBB 香蕉栽培品种群;一份 2023 年产业数据简报整理的 2021 年估算中,粉蕉约占中国香蕉种植面积的 20%
Pisang Awak 是栽培中最常见的 ABB 香蕉类型之一。传统资料通常把它归入 ABB 基因组型、Pisang Awak 亚组;较新的 MGIS Cultivar Group Catalogue 则将其作为 Pisang Awak 栽培品种群处理,基因组组成列为 ABB / ABBB,并收录三倍体和四倍体材料。[1][2][3]
中国大陆现代科研文献中的“粉蕉”通常对应 Pisang Awak 类型,英文论文中常直接写作 Fenjiao(Musa ABB, Pisang Awak)。[4][5]
名称与分类
| 写法 | 类型或层级 | 说明 |
|---|---|---|
| Pisang Awak 亚组 | 传统栽培分类 | MGIS 传统 accession 页面常用的分类名称 |
| Pisang Awak 栽培品种群 | 较新目录分类 | MGIS Cultivar Group Catalogue 采用的口径 |
| Pisang Awak | 国际常用名称 | 可指整个栽培品种群,也可出现在具体材料名称中 |
| 粉蕉 | 中国大陆常用名称 | 现代科研和产业语境中主要对应 Pisang Awak 类型 |
| Fenjiao | 中文名转写 | 国内外研究中国粉蕉时常见 |
| Namwa / Kluai Namwa | 泰国名称 | 泰国重要的 Pisang Awak 类型,内部存在多个地方亚型 |
| Kayinja | 乌干达等东非地区名称 | Pisang Awak 地方类型,常用于榨汁和酿造 |
| Karpuravalli | 印度栽培名称 | 较新目录中有 accession 归入 Pisang Awak |
| 广粉1号、矮粉1号、中粉1号、粉杂1号等 | 中国具体品种 | 地方选择、诱变或杂交选育形成的粉蕉材料 |
“粉蕉”这一中文名称并不是所有中文地区都指同一类香蕉。台湾农业部门的资料记载,当地历史上“粉蕉”曾先后用于 AAA、AAB 和 ABB 材料;目前台湾民间所称的一类“粉蕉”被归入 Bluggoe 亚组,与中国大陆现代科研语境中的 Pisang Awak 并不是同一个分类单元。[6]
分类位置
| 项目 | 内容 |
|---|---|
| 科 | 芭蕉科 Musaceae |
| 属 | 芭蕉属 Musa |
| 主要倍性 | 三倍体(2n = 3x = 33);另有四倍体材料 |
| 主要基因组型 | ABB |
| 较新目录基因组组成 | ABB / ABBB |
| 祖源 | Musa acuminata(A)与 Musa balbisiana(B)相关祖源 |
| 传统栽培分类 | Pisang Awak 亚组 |
| 较新目录口径 | Pisang Awak 栽培品种群 |
| 主要用途 | 鲜食、烹调、加工、榨汁和酿造 |
遗传结构
较新的染色体尺度祖源研究显示,Pisang Awak 不是由全球同一份克隆简单扩散形成的单一类型。Sardos 等在相关材料中识别出至少五种近缘基因组图式,包括两种三倍体和三种四倍体类型。部分三倍体图式之间的差异不符合单纯克隆连续变异的解释,支持栽培品种群内部存在不止一次有性形成过程。[2]
MGIS 当前的 Pisang Awak 栽培品种群页面同样将其基因组组成列为 ABB / ABBB,记录 3x / 4x 两种倍性,并以 Namwa Khom(ITC0659)等材料作为分子表征参考。[1]
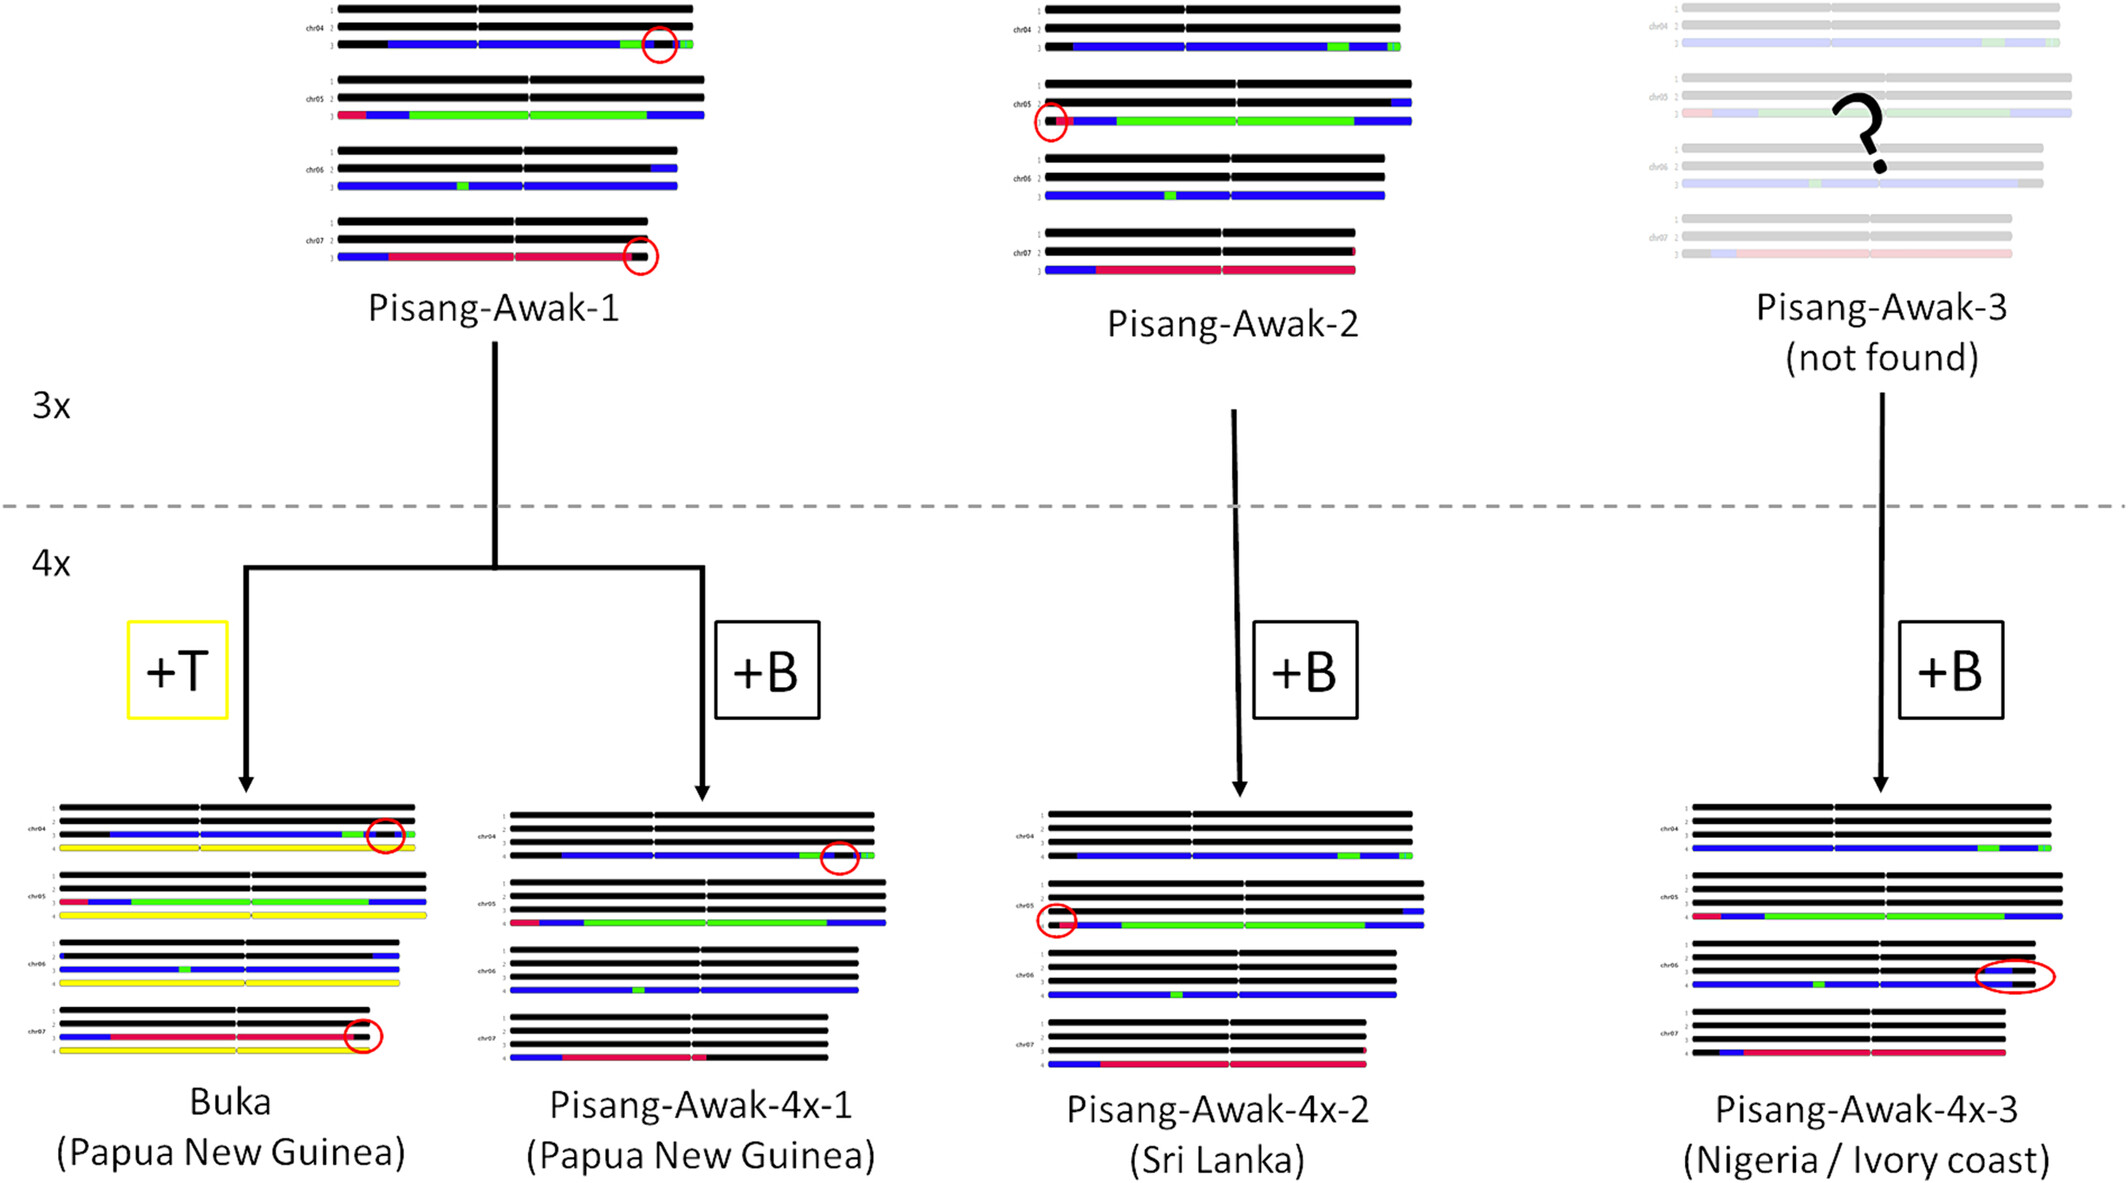
这一遗传结构也解释了为什么 Namwa、Kayinja、Karpuravalli 以及不同中国粉蕉材料虽然可以归入同一较大的栽培品种群,却在株高、果实、用途和病害反应上存在明显差异。
形态特征
Pisang Awak 内部形态变异较大,尤其体现在株高、果指形状、果皮蜡质和果肉性状上。以下数据主要用于展示栽培品种群内部的变化幅度。
株高与株形
| 材料 | 假茎高度 | 资料来源中的特点 |
|---|---|---|
| 广粉1号 | 平均约 4.26 m | 中国典型高秆粉蕉品种 |
| 中粉1号 | 平均约 4.17 m | 树势高大粗壮 |
| 粉杂1号 | 约 3.25 m | 树势中等 |
| 矮粉1号 | 约 2.5~3.0 m | 明显矮化,生育期较传统高秆粉蕉缩短 |
| 矮蕉1号 | 约 2.3~2.5 m | 矮化选育材料 |
| Kluai Namwa 地方材料 | 因材料而异 | 泰国 Namwa 内部存在明显表型差异 |
矮粉1号的官方资料记载其生长周期约 400 天,比常规粉蕉缩短约 60~90 天;广东省农科院早期现场鉴评中也记录了明显的矮化和生育期缩短。[7][9]
假茎、叶片与花序
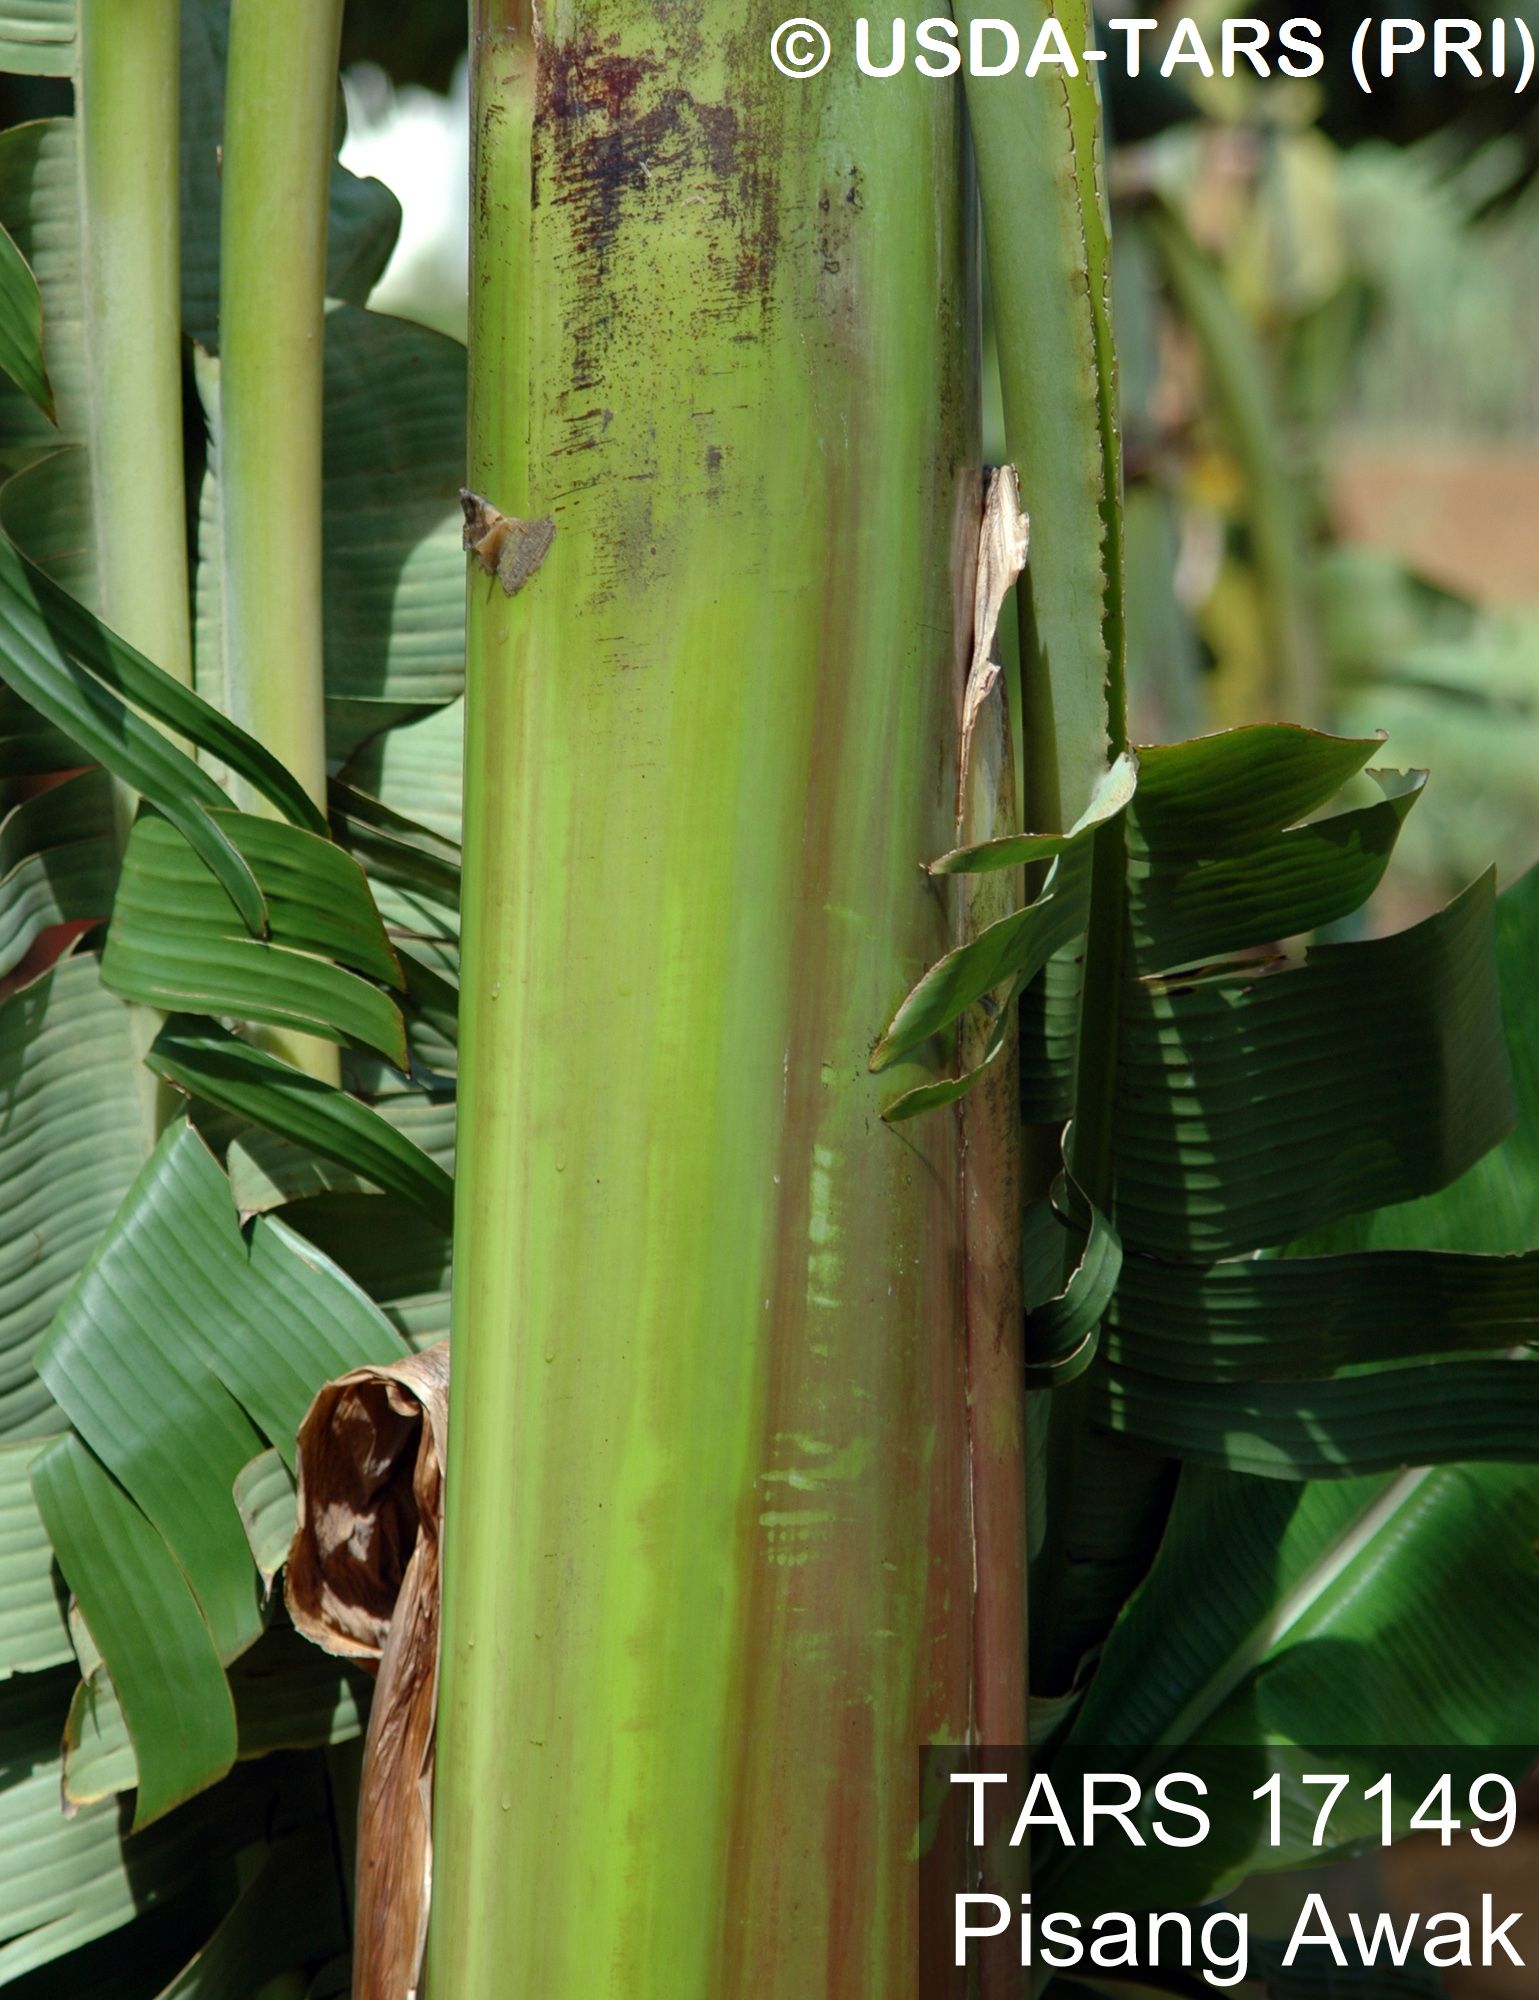
广粉1号的公开品种资料记录其假茎黄绿色,成熟植株叶片较大。官方资料给出的平均假茎高度约 4.26 m。[7]
印度尼西亚西加里曼丹的一份 Pisang Awak 标准化形态观察记录到绿色假茎、下垂叶姿和较直立的叶柄沟边缘,显示不同地域材料之间存在形态差异。[10]
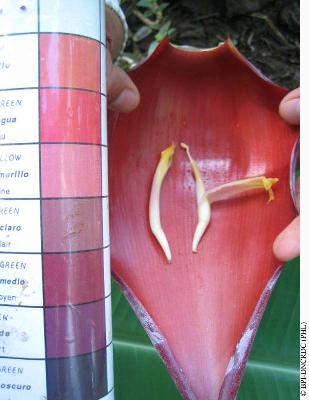
广粉1号的品种描述还记录了垂直向下的花轴和卵形雄蕾等花序性状。[11]
果穗与果实
中国不同粉蕉品种的果实差异很明显。
广粉1号的公开品种资料中,果指长约 16.9 cm,成熟果皮黄色,果肉为奶油色或乳白色;平均株产约 29.5 kg。[7]
粉杂1号的果指明显更短粗,长度和周长均约 13.6 cm,单果重约 143 g;成熟果皮黄色,果肉奶油色或乳白色,肉质软滑,味浓甜带微酸。[7]
中粉1号的果指平均长约 15.0 cm、周长约 15.1 cm,果肉乳白,味浓甜、微酸微香,公开资料记载其较耐储运。[7]
泰国农业推广资料中的 Kluai Namwa 成熟果肉为白色,具有黏糯感,既可鲜食也用于传统加工。[12]
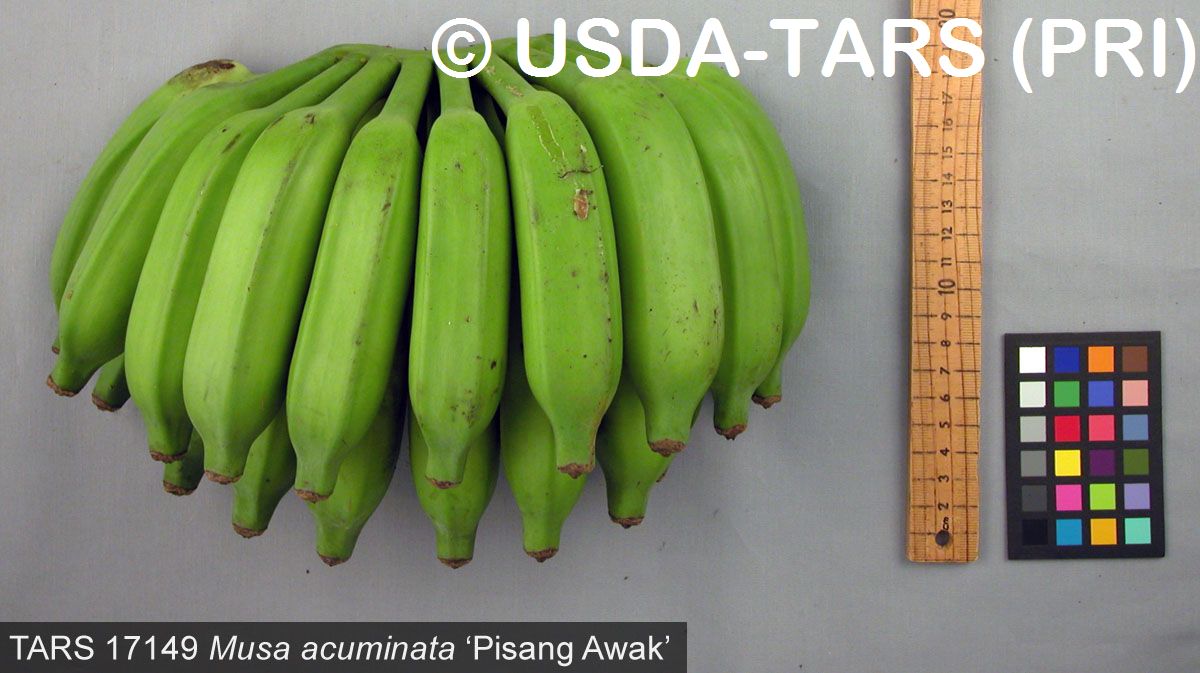
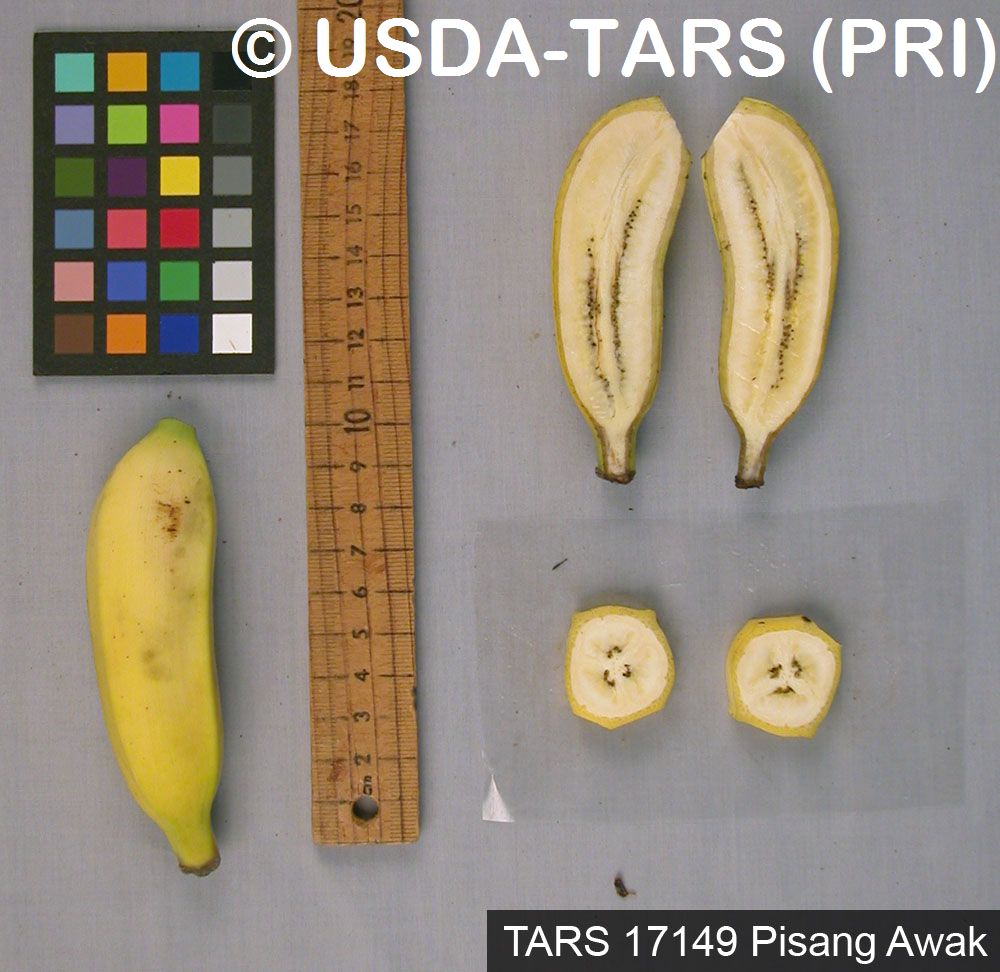
果指棱角和果皮蜡质在 Pisang Awak 内部同样不是固定性状。东非 Kayinja 通常指果实蜡质很少或没有的类型,而当地有蜡质的变异型另有名称。[13]
生长习性与利用
Pisang Awak 在多个地区以环境适应能力较强著称。印度的香蕉抗旱研究把 Karpuravalli、Chinia 等 Pisang Awak 材料列入耐旱类型;在水分不足时,部分材料的果梳数量下降,但果指大小仍能相对维持。[14]
传统高秆粉蕉在台风频发地区更容易发生倒伏,因此降低株高一直是中国粉蕉育种的重要方向。[9]
中国南方
粉蕉在广东、广西、海南、云南、福建等香蕉产区均有种植。2023 年发布的一份中国香蕉产业数据简报引用的 2021 年估算显示,香牙蕉种植面积约占 75%,粉蕉约占 20%。[15]
泰国 Namwa
Kluai Namwa 是泰国重要的 ABB 香蕉类型。2025 年的分子研究显示,泰国 Namwa 内部存在较明显的遗传和表型分化,不同亚型在株高、果实颜色等方面存在差异。[8]
东非 Kayinja
在乌干达,Kayinja 是 Pisang Awak 的地方名称之一,主要用于榨汁和酿造蕉啤。ProMusa 记载其成熟果汁很甜,经稀释后可作为饮料。[13]
Pisang Awak 因此并不是单一用途的甜蕉,其利用方式横跨鲜食、未熟果烹调、加工、榨汁和发酵酿造。
采后表现
中国粉蕉的后熟和软化过程变化较快,是近年来采后生理研究的重要对象。脂质组学和 1-MCP 相关研究均记录了 Fenjiao 后熟过程中质构、香气和代谢的明显变化。[5][16]
不同品种的采后表现并不一致。中粉1号的公开品种资料记载其果皮相对较厚,较耐储运。[7]
病害反应
香蕉枯萎病 Foc R1
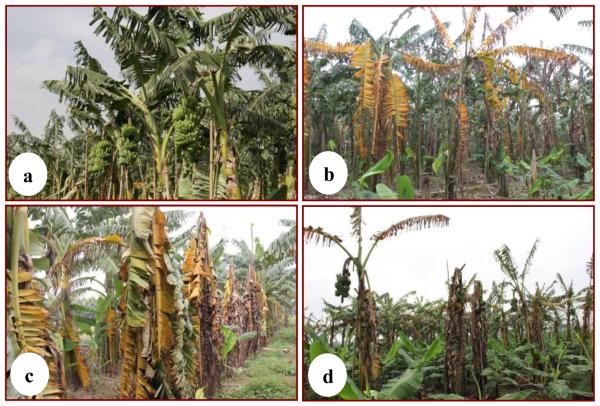
Foc R1 是 Pisang Awak 的重要病害限制之一。
2025 年发表在 Scientific Reports 的 99 份香蕉 accession 评价显示,ABB 材料对 Foc R1 的反应总体偏感病,田间试验中 14 份 ABB accession 有 12 份达到高感等级。论文还将 Pisang Awak(ITC0213)和 Kluai Namwa Khom(ITC0526)列入总体易感至高感的一组材料。[17]
越南红河流域的调查中,Pisang Awak 也主要受到 Foc R1/R2 类群危害。[18]
中国品种之间存在明显差异:广粉1号和矮粉1号的公开资料均将枯萎病列为主要限制,而中粉1号和粉杂1号表现出较强的田间耐病或抗病能力。[7][19]
热带 4 号生理小种(TR4)
TR4 同样能够侵染 Pisang Awak,但不同材料的反应并不一致。
2025 年印度 accession 评价中,Namwa Khom 在 TR4 田间试验中表现为免疫、在温室评价中为中抗;与此同时,Pisang Awak(ITC0213)和 Kluai Namwa Khom(ITC0526)在部分 TR4 评价中出现感病反应。[17]
2022—2023 年越南北部红河流域调查在 Pisang Awak 纯作蕉园和庭院中均确认了 TR4 感染。研究同时指出,当地 Pisang Awak 在部分混种田间环境中的实际发病程度低于 Cavendish,但筛选试验仍确认其可被 TR4 侵染。[18]
细菌性软腐病
细菌性软腐病是中国粉蕉生产中的重要病害,主要病原之一为 Dickeya zeae。
2022 年的基因组与致病性研究指出,该病已扩散至广东、广西、云南、福建和海南等主要香蕉产区,并对易感的 Musa ABB Pisang Awak 造成明显损失。该研究直接测试了广粉1号、青粉、苹果粉和粉杂等 4 个 Pisang Awak 品种,均对所测试的 3 个香蕉来源 D. zeae 菌株表现敏感。[20]
早期病原学研究已在中国香蕉软腐病中鉴定出 D. zeae。[21]
鞘腐病
中国粉蕉鞘腐病可涉及不同病原。
广西曾报道由 Fusarium proliferatum 引起的 Pisang Awak 鞘腐病。[22]
另一类近年来受到关注的香蕉鞘腐病由变栖克雷伯氏菌(Klebsiella variicola)引起。2023 年 Plant Disease 的研究从广东和广西病株中获得 12 个 K. variicola 分离株,并将粉杂1号(Fenza No. 1)列为该病涉及的重要栽培品种之一。[23]
其他病害
布隆迪试验中,Pisang Awak 在香蕉束顶病毒暴露后可长期无明显症状,但植株中仍检测到病毒,表现为耐受而不是完全抗病。[24]
Kayinja 对香蕉细菌性萎蔫病(BXW)感病,并对昆虫传播较敏感。[13]
国内 EMS 诱变获得的 ReFen 1(RF1)被报道具有半矮化、耐寒性提高以及叶斑病抗性改善等性状。[4]
B 基因组与 eBSV
Pisang Awak 含有 B 祖源。Musa balbisiana B 基因组中存在内源香蕉线条病毒序列(eBSV),这一问题在含 B 基因组香蕉的杂交育种、组织培养和种质流转中具有实际意义。[25]
不过,eBSV 的插入位点、等位基因状态和激活行为会因具体材料而异,不能把 M. balbisiana 二倍体中的情况直接等同于所有 ABB Pisang Awak 材料。[26]
中国代表性粉蕉品种
广粉1号
广粉1号从广东澄海农家粉蕉中优选而成,2006 年通过广东省品种审定,2017 年通过国家非主要农作物品种登记。官方资料记录其平均假茎高约 4.26 m,果指长约 16.9 cm,平均株产约 29.5 kg,生长周期约 15~17 个月。[7]
矮粉1号
矮粉1号是中国粉蕉矮化育种的重要材料。公开资料记录其假茎约 2.5~3.0 m,生长周期约 400 天,新植蕉平均单株产量约 21 kg,可溶性固形物约 24.4%;其易感枯萎病,主要适合非疫区种植。[7][9]
中粉1号
中粉1号由广东省农业科学院果树研究所选育,2011 年通过广东省品种审定。官方资料记录其假茎平均高约 4.17 m,平均单株产量约 26 kg,果指长约 15.0 cm、周长约 15.1 cm,较耐储运;在重病区田间平均感病率约 21.7%,表现出一定枯萎病耐病性。[7]
粉杂1号(苹果粉)
粉杂1号来源于广粉1号的偶然实生苗,由广东省农业科学院果树研究所与中山市农业部门共同选育。后续基因组鉴定确认其为四倍体,染色体数 2n = 4x = 44,基因组组成 ABBB。[27]
广东省农科院资料记录其假茎约 3.25 m,果指短粗,平均株产约 13.9 kg,田间抗香蕉枯萎病能力较强。独立的品种选育论文也将抗枯萎病作为其主要育种和推广性状之一。[7][19]
ReFen 1(RF1)
ReFen 1 是以 EMS 诱变获得的 Pisang Awak 突变材料。研究报道其具有半矮化、部分农艺性状改善、耐寒性增强及叶斑病抗性提高等特点。[4]
代表性种质材料
MGIS 当前的 Pisang Awak Cultivar Group 页面收录了多份不同名称、不同倍性的 accession。以下列出其中较有代表性的材料:[1]
| 种质材料 | accession 编号 | 记录 |
|---|---|---|
| Namwa Khom | ITC0659 | ABB,Pisang Awak;较新目录的重要分子表征参考材料 |
| Pisang Awak | ITC0213 | ABB,Pisang Awak |
| Pisang Awak | ITC0339 | ABB,Pisang Awak;与 ITC0213 为不同馆藏记录 |
| Kayinja | ITC0087 | ABB,东非 Pisang Awak 类型 |
| Kluai Namwa Khom | ITC0526 | ABB;MGIS 田间核验曾标记 mislabelling,当前田间材料为高秆,而 true-to-type 被描述为 dwarf and robust |
| Fougamou 1 | ITC0101 | ABB,Pisang Awak |
| Karpuravalli | ITC1721 | 印度相关材料,较新目录归入 Pisang Awak |
| Ramu Yawa | / | Pisang Awak 四倍体相关图式 |
| Nzizi | ITC0334 | Pisang Awak 四倍体相关图式 |
| Foulah 4 | ITC0051 | Pisang Awak 四倍体相关图式 |
ITC0526 的田间核验备注来自 MGIS:馆藏管理员将现有植株标记为疑似误标,并注明真正的 Kluai Namwa Khom 应为矮生、粗壮类型。[28]
与香牙蕉(Cavendish)的主要区别
| 比较项目 | 粉蕉 / Pisang Awak | 香牙蕉 / Cavendish |
|---|---|---|
| 主要基因组型 | 传统材料多为 ABB;另有 ABBB 四倍体 | AAA |
| 内部结构 | 至少五种近缘基因组图式,包含三倍体和四倍体 | 经典商业材料高度近缘,以无性系变异和选择为主 |
| 株形 | 从 2~3 m 左右矮化材料到 4 m 以上高秆材料均有 | 从矮生到较高类型连续变化 |
| 果实 | 中国部分代表品种相对短粗,果肉常为乳白或奶油色 | 商业代表材料果指通常较长、略弯 |
| 用途 | 鲜食、烹调、加工、榨汁、酿造 | 以鲜食和国际商品供应为主 |
| Foc R1 | 多份材料感病;中国也有耐病、抗病育成品种 | 传统 Cavendish 对 R1 具有抗性 |
| TR4 | 可受侵染,材料间反应差异较大 | 主流材料感病,部分体细胞变异选择材料耐病性提高 |
| 中国突出病害 | 枯萎病、细菌性软腐病、鞘腐病 | TR4、黑叶斑病等 |
| 采后 | 中国部分鲜食品种后熟较快,品种间差异明显 | 已形成成熟的国际青果运输和催熟体系 |
| 中国种植面积 | 2021 年估算约 20% | 2021 年估算约 75% |
与龙牙蕉、大蕉的区别
| 比较项目 | 粉蕉 | 龙牙蕉 | 大蕉 |
|---|---|---|---|
| 主要基因组型 | ABB;另有 ABBB 材料 | AAB | ABB |
| 主要国际分类 | Pisang Awak | Silk | Bluggoe 等 |
| 中国常见果形 | 部分品种相对短粗 | 较细长、弯度较小 | 果指较大,常有较明显棱角 |
| 主要用途 | 鲜食兼加工 | 鲜食 | 烹调用途较多 |
早期 AFLP 研究显示,中国粉蕉、大蕉和龙牙蕉分别具有较丰富的类群内多样性,粉蕉与大蕉虽然都包含 ABB 材料,但遗传上并不是同一个类群。[29]
品种信息速查
| 项目 | 概括 |
|---|---|
| 中文名 | 粉蕉 |
| 英文名 | Pisang Awak |
| 其他写法 | Fenjiao |
| 主要基因组型 | ABB;较新目录另含 ABBB 四倍体 |
| 传统分类 | Pisang Awak 亚组 |
| 较新分类 | Pisang Awak 栽培品种群 |
| 主要用途 | 鲜食、烹调、加工、榨汁和酿造 |
| 株形 | 高秆和矮生材料均有 |
| 果实 | 中国部分鲜食品种果指较短粗,果肉乳白或奶油色;群内变化较大 |
| 代表地区类型 | Namwa、Kayinja、Karpuravalli 等 |
| 中国代表品种 | 广粉1号、矮粉1号、中粉1号、粉杂1号、ReFen 1 |
| Foc R1 | 多份国际 accession 感病;中国育成品种中存在耐病、抗病材料 |
| TR4 | 可侵染 Pisang Awak,不同材料反应差异明显 |
| 中国重要细菌病害 | Dickeya zeae 软腐病、Klebsiella variicola 鞘腐病 |
| 遗传结构 | 至少五种近缘基因组图式,包含三倍体与四倍体 |
| 中国种植地位 | 2021 年相关产业估算约占香蕉种植面积 20% |
参考资料
- Musa Germplasm Information System (MGIS). Pisang Awak (Cultivar group)[DB/OL]. [2026-08-28]. https://www.crop-diversity.org/mgis5/cultivar-group-catalogue-group/pisang-awak.
- Sardos J, Cenci A, Martin G, et al. Painting the diversity of a world's favorite fruit: a next generation catalog of cultivated bananas[J]. Plants, People, Planet, 2025, 7(1): 263–283. DOI: 10.1002/ppp3.10581.
- ProMusa. Pisang Awak[EB/OL]. (2020-07-17)[2026-08-28]. https://www.promusa.org/Pisang+Awak.
- Wang X, Wang A, Li Y, et al. A novel banana mutant “RF 1” (Musa spp. ABB, Pisang Awak subgroup) for improved agronomic traits and enhanced cold tolerance and disease resistance[J]. Frontiers in Plant Science, 2021, 12: 730718. DOI: 10.3389/fpls.2021.730718.
- Zhu X, Song Z, Li Q, et al. Physiological and transcriptomic analysis reveals the roles of 1-MCP in the ripening and fruit aroma quality of banana fruit (Fenjiao)[J]. Food Research International, 2020, 130: 108968. DOI: 10.1016/j.foodres.2019.108968.
- 台湾农业部农业知识入口网. 粉蕉(ABB)[EB/OL]. 香蕉主题馆. (2007-09-20, updated 2024-11-07)[2026-08-28]. https://kmweb.moa.gov.tw/subject/subject.php?id=11043.
- 广东省农业科学院. 果树品种[EB/OL]. (2022-08-26)[2026-08-28]. https://www.gdaas.cn/fwsnn/zdpz/content/post_1017744.html.
- Boonsrangsom T, Sujipuli K, Premjet D. Genetic differentiation of Pisang Awak subvarieties and genetic variation among ‘Mali-Ong’ plantlets in Thailand using RAPD and SRAP markers[J]. Journal of Genetic Engineering and Biotechnology, 2025, 23(4): 100577. DOI: 10.1016/j.jgeb.2025.100577.
- 广东省农业科学院. 粉蕉矮化育种取得重要突破[EB/OL]. (2018-11-08)[2026-08-28]. https://www.gdaas.cn/ywzx/content/post_993053.html.
- Sunandar A, Kahar A P. Morphology and anatomy characteristic of Pisang Awak (Musa paradisiaca cv. Awak) in West Kalimantan[J]. Biosaintifika: Journal of Biology & Biology Education, 2017, 9(3): 579–584. DOI: 10.15294/biosaintifika.v9i3.11258.
- 广粉1号粉蕉品种资料[DB/OL]. 品种大全·果树, 种业商务网, 2017-10-12[2026-08-28]. 登记编号 GPD 香蕉(2017)440001. https://www.chinaseed114.com/seed/12/seed_59448.html.
- Department of Agricultural Extension, Ministry of Agriculture and Cooperatives, Thailand. Banana[EB/OL]. (2023-04-12)[2026-08-28]. https://www.doae.go.th/en/banana-2/.
- ProMusa. Kayinja[EB/OL]. (2025-02-19)[2026-08-28]. https://www.promusa.org/Kayinja.
- Ravi I, Uma S, Vaganan M M, Mustaffa M M. Phenotyping bananas for drought resistance[J]. Frontiers in Physiology, 2013, 4: 9. DOI: 10.3389/fphys.2013.00009.
- 南方+. 2023年中国香蕉产业数据分析简报[EB/OL]. (2023-09-14)[2026-08-28]. https://static.nfnews.com/content/202309/14/c8102284.html.
- Su M, Zhuang L, Zhang Q, et al. Lipid dynamics of ‘Fenjiao’ bananas (Musa ABB Pisang Awak) during post-ripening based on lipidomics analysis[J]. Postharvest Biology and Technology, 2024, 207: 112611. DOI: 10.1016/j.postharvbio.2023.112611.
- Thangavelu R, Loganathan M, Backiyarani S, et al. Screening of exotic banana accessions for their resistance to Fusarium wilt race 1 and tropical race 4 in India[J]. Scientific Reports, 2025, 15: 25060. DOI: 10.1038/s41598-025-10843-z.
- Nguyen C H, Nguyen T T, Mostert D, Viljoen A, Kearsley E, Blomme G. The evolving threat of Fusarium wilt TR4 to small-scale mixed cultivar banana production in the Red River Basin of Northern Vietnam[J]. Journal of Fungi, 2025, 11(9): 653. DOI: 10.3390/jof11090653.
- 吴元立, 黄秉智, 杨护, 等. 抗枯萎病优质特色香蕉新品种粉杂1号的选育[J]. 果树学报, 2022, 39(12): 2450–2454. DOI: 10.13925/j.cnki.gsxb.20220482.
- Zhang J, Arif M, Shen H, Sun D, Pu X, Hu J, Lin B, Yang Q. Genomic comparisons and phenotypic diversity of Dickeya zeae strains causing bacterial soft rot of banana in China[J]. Frontiers in Plant Science, 2022, 13: 822829. DOI: 10.3389/fpls.2022.822829.
- Zhang J X, Shen H F, Pu X M, et al. Identification of Dickeya zeae as a causal agent of bacterial soft rot in banana in China[J]. Plant Disease, 2014, 98(4): 436–442. DOI: 10.1094/PDIS-07-13-0711-RE.
- Huang S P, Wei J G, Guo T X, et al. First report of sheath rot caused by Fusarium proliferatum on Pisang Awak banana (Musa ABB) in China[J]. Journal of Plant Pathology, 2019, 101(4): 1271–1272. DOI: 10.1007/s42161-019-00329-z.
- Sun Y, Zheng C Y, Zhou J, et al. Pathogen profile of Klebsiella variicola, the causative agent of banana sheath rot[J]. Plant Disease, 2023, 107(8): 2325–2334. DOI: 10.1094/PDIS-09-22-2018-RE.
- Niyongere C, Ateka E, Losenge T, Blomme G, Lepoint P. Screening Musa genotypes for banana bunchy top disease resistance in Burundi[C]//Van den Bergh I, Smith M, Swennen R, Hermanto C, eds. Acta Horticulturae 897. Leuven: ISHS, 2011: 439–447. DOI: 10.17660/ActaHortic.2011.897.60.
- Tripathi J N, Ntui V O, Ron M, et al. CRISPR/Cas9 editing of endogenous banana streak virus in the B genome of Musa spp. overcomes a major challenge in banana breeding[J]. Communications Biology, 2019, 2: 46. DOI: 10.1038/s42003-019-0288-7.
- Umber M, Pressat G, Fort G, et al. Risk assessment of infectious endogenous banana streak viruses in Guadeloupe[J]. Frontiers in Plant Science, 2022, 13: 951285. DOI: 10.3389/fpls.2022.951285.
- 杨兴玉, 许林兵, 吴元立, 邱迪洋, 范琳琳, 黄秉智. 香蕉杂交种‘粉杂1号’ABBB基因组鉴定[J]. 园艺学报, 2022, 49(9): 1991–1997. DOI: 10.16420/j.issn.0513-353x.2021-0514.
- Musa Germplasm Information System (MGIS). ITC0526 – Kluai Namwa Khom: Field verification[DB/OL]. (2026-01-06)[2026-08-28]. https://www.crop-diversity.org/mgis/content/02phl0087-kluai-namwa-khom-0.
- 易干军, 余晓英, 霍合强, 等. 粉蕉、大蕉和龙牙蕉的 AFLP 分类研究[J]. 园艺学报, 2002, 29(5): 413–417.